Гетероциклы, нуклеотиды и нуклеиновые кислоты
В бензольном кольце все вершины заняты углеродом. Если в само кольцо входит, например, азот или кислород, меняются распределение электронов и химические свойства. Такие кольца помогают понять строение азотистых оснований, а затем — нуклеотидов и нуклеиновых кислот.
Уровень: углубление 10–11, отдельные детали факультативны. Это дополнительный маршрут после углеводов и аминокислот и белков. Понадобятся чтение органического скелета, ароматическая система и перенос протона. Для основного школьного маршрута достаточно различать компоненты нуклеотида и два типа связей; подробное строение колец можно изучить позднее.
Гетероатом должен входить в кольцо
Гетероциклическое соединение содержит цикл, в состав которого входят атомы хотя бы двух разных элементов. В рассматриваемых органических примерах это углерод вместе с N, O или S.
Наличие кислорода или азота в молекуле ещё не делает её гетероциклом. У фенола OH находится снаружи шестичленного углеродного кольца; у анилина так же расположена NH2. Их кольца карбоциклические. В фуране кислород — одна из пяти вершин кольца. Сначала проследите замкнутый путь связей, затем назовите входящие в него атомы. Это структурный критерий, а не выбор по названию или запаху.
| Соединение | Кольцевой скелет | Формула незамещённого соединения | Что различать |
|---|---|---|---|
| Пиридин | 6 атомов: 5C и N | C5H5N | Пара N вне ароматической π-системы |
| Пиррол | 5 атомов: 4C и N | C4H5N | Пара N участвует в π-системе; в незамещённом пирроле есть N–H |
| Фуран | 5 атомов: 4C и O | C4H4O | В π-системе участвует одна из двух пар O |
| Тиофен | 5 атомов: 4C и S | C4H4S | Ароматический гетероцикл, а не обычный диен |
| Пиримидин | 6 атомов: 4C и 2N | C4H4N2 | Два N разделены одним C в кольце |
| Пурин | Сросшиеся пяти- и шестичленный циклы | C5H4N4 | У двух колец общая связь и два общих атома; всего 9 кольцевых атомов |
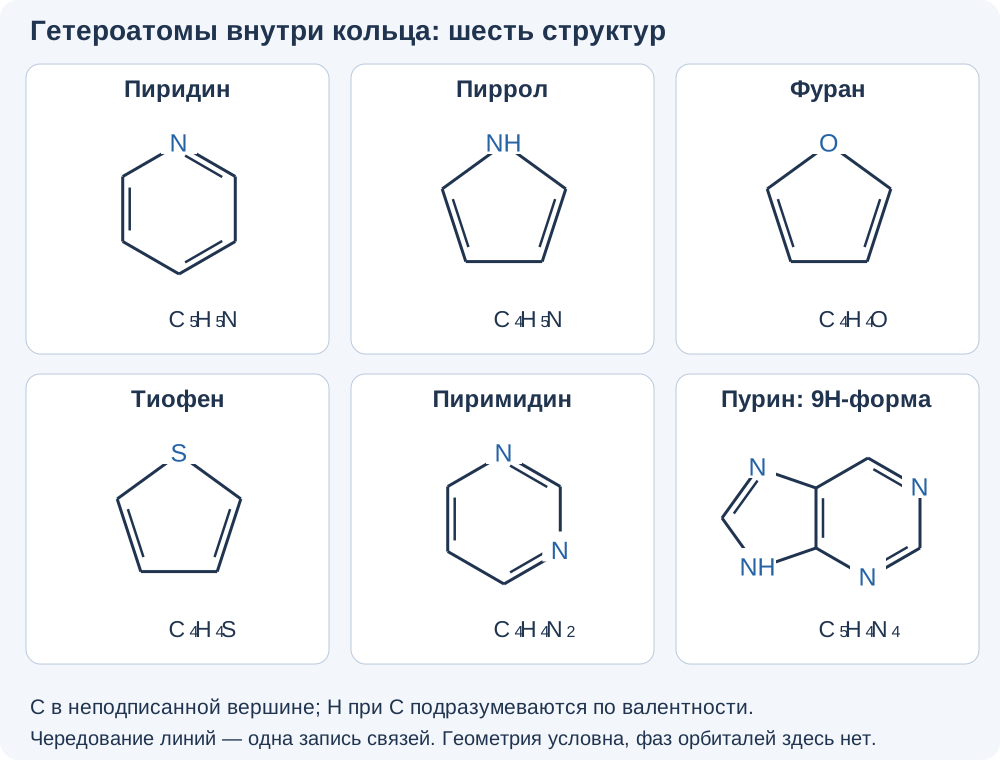
Гетероциклы бывают и неароматическими: например, насыщенное пятичленное кольцо тетрагидрофурана содержит O, но не имеет непрерывной сопряжённой π-системы. Поэтому «гетероцикл» и «ароматическое соединение» отвечают на разные вопросы. Структурное определение можно сверить с IUPAC H02798.
Одинаковый N не означает одинаковую основность
В простой плоской орбитальной модели пиридина каждый из шести атомов кольца даёт по одному электрону в общую π-систему. Неподелённая пара N располагается в плоскости кольца и в этот счёт не входит. Она может образовать связь с протоном:
C5H5N + H3O+ ⇌ C5H6N+ + H2O.
У N пиррольного типа в незамещённом пирроле ситуация другая: четыре C дают четыре π-электрона, а пара N — ещё два. Протонирование именно этой пары нарушило бы исходную ароматическую систему. Поэтому нельзя переносить на пиррольный N обычную основность алкиламина. Это не утверждение, что в сильной кислоте пиррол вообще не претерпевает превращений: возможны другие центры протонирования и последующие реакции.
У фурана в аналогичной модели учитывают четыре электрона двух двойных связей и одну пару O: всего шесть. Вторую пару O второй раз не прибавляют. Условие 4n + 2 применяется вместе с проверкой цикличности, сопряжения и подходящей геометрии; одно число без структуры недостаточно. Модели колец разобраны в OpenStax 15.5, различия основности — в 24.9.
Разбор 1. Где находится O и какие электроны считать
Даны фенол, фуран и тетрагидрофуран. У фенола O находится в заместителе: это не гетероциклическое кольцо. У двух остальных O входит в цикл, поэтому оба — гетероциклы. Но только у фурана в принятой модели есть ароматический секстет: 4 + 2 = 6 π-электронов. У тетрагидрофурана нет соответствующей цепочки p-орбиталей. Нельзя получить его ароматичность, просто заметив у O две пары.
От кольца к азотистому основанию
В обычной записи компонентов ДНК и РНК используют пять названий: аденин A, гуанин G, цитозин C, тимин T и урацил U. A и G — производные пуринового скелета; C, T и U — пиримидинового. Название скелета не является полной формулой основания: заместители и связи с O/NH2 меняют состав и свойства. Например, тимин отличается от урацила метильным заместителем вместо одного H при C5 кольца.
| Основание | Скелет | Обычный набор ДНК | Обычный набор РНК |
|---|---|---|---|
| Аденин A | Пуриновый | Да | Да |
| Гуанин G | Пуриновый | Да | Да |
| Цитозин C | Пиримидиновый | Да | Да |
| Тимин T | Пиримидиновый | Да | Не входит в стандартную четвёрку |
| Урацил U | Пиримидиновый | Не входит в стандартную четвёрку | Да |
Это стандартная учебная модель, а не запрет на модифицированные основания. Например, в природных РНК встречаются химически изменённые остатки. Слово «основание» тоже не означает одинаковую силу всех соединений или единственное место присоединения протона. Роль определённого N устанавливают по структуре. Классы и стандартный состав проверены по OpenStax 28.1.
Основание, нуклеозид и нуклеотид
В разбираемых обычных N-нуклеозидах азотистое основание ковалентно связано с сахарным фрагментом через C1′ сахара и N основания. Нуклеотид дополнительно содержит фосфатный фрагмент. Нуклеозид без фосфата и нуклеотид — разные соединения.
В обычных нуклеозидах ДНК и РНК связь β-N-гликозидная: C1′ сахара соединён с N9 пуринового или N1 пиримидинового основания. Штрих в C1′ отличает нумерацию сахара от нумерации кольца основания. Используются D-сахара; пространственное обозначение D не означает знак оптического вращения. Здесь достаточно научиться читать соединённость; подробная стереохимия — отдельный факультатив.
Рибоза имеет формулу C5H10O5. В 2-дезоксирибозе C5H10O4 при C2′ вместо OH находится H. Это не удаление целого звена сахара: пять C сохраняются. В нуклеозиде сахар представлен циклическим фрагментом, а не отдельной свободной молекулой из раствора.
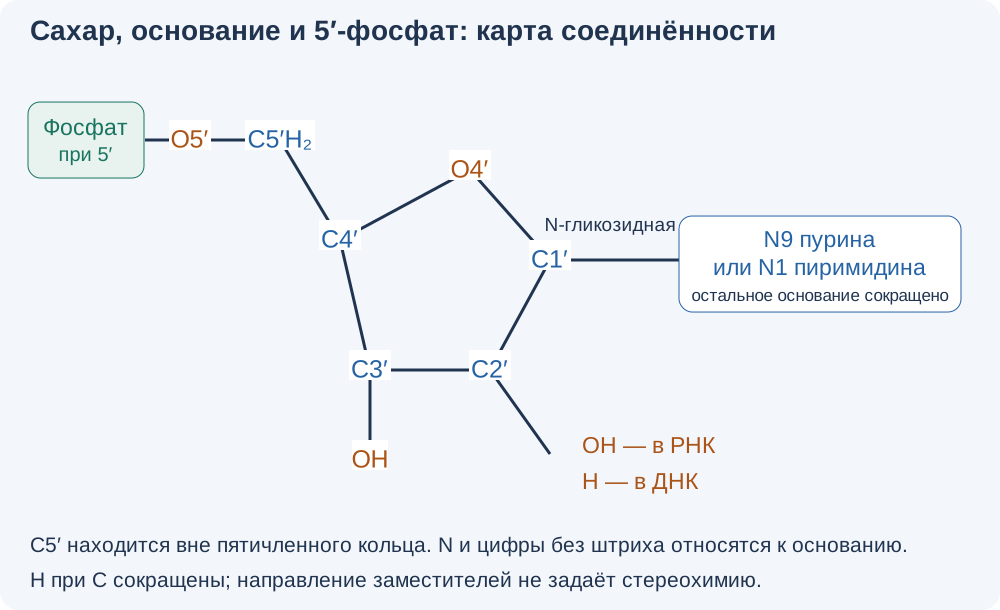
Аденин — основание; аденозин — его рибонуклеозид; аденозин-5′-монофосфат АМФ (AMP) — нуклеотид. ATP, аденозинтрифосфат, также относится к нуклеотидам: наличие нескольких фосфатных групп не отменяет класса. Нельзя автоматически назвать любую связь с P фосфодиэфирной: в трифосфатном фрагменте есть связи P–O–P, отличающиеся от связи сахара с фосфатом.
Определение IUPAC N04253 допускает и другие типы нуклеозидов, включая C-нуклеозиды; мы сознательно ограничили рисунок обычной N-связью. Конвенции C1′–N9/N1, β-D и записи AMP/ATP проверены по IUPAC–IUB.
Разбор 2. Гидролиз и масса воды
Для задачи полностью гидролизованы 2,67 г аденозина до аденина и рибозы; иных процессов нет. Используем заданные округлённые атомные массы C 12, H 1, N 14, O 16. Формула аденина C5H5N5, аденозина C10H13N5O4. Суммарный атомный счёт:
C10H13N5O4 + H2O → C5H5N5 + C5H10O5.
M(аденозина) = 267 г/моль; n = 2,67/267 = 0,0100 моль.
Получатся по 0,0100 моль продуктов: 1,35 г аденина и 1,50 г рибозы. Сумма 2,85 г больше исходных 2,67 г на 0,18 г воды, вошедшей в продукты. Это не нарушение сохранения массы. Суммарная запись не описывает все элементарные стадии гидролиза и не предлагает получить чистый продукт одним смешиванием веществ.
Как соединены соседние звенья
В обычной цепи ДНК или РНК фосфат соединяет O при C3′ одного сахарного остатка с O при C5′ следующего. Поэтому связь называют 3′,5′-фосфодиэфирной. Внутренний мостик содержит две эфирные связи P–O–C, а не связь между двумя азотистыми основаниями.
…сахар–O3′–P(=O)(O−)–O5′–сахар…
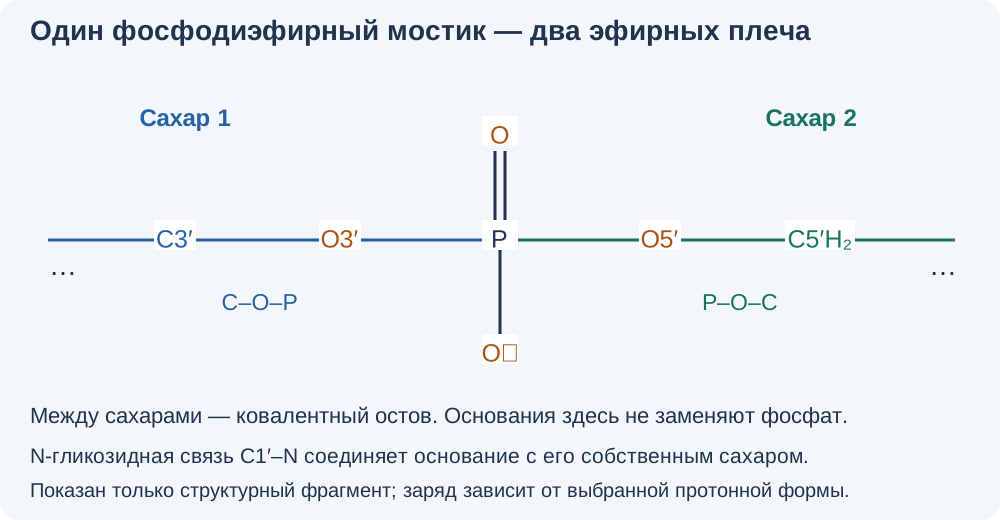
Цепь направленна. Запись последовательности обычно читают от 5′ к 3′, но это не означает, что на каждом 5′-конце обязательно есть свободный фосфат: концевые группы бывают разными и в расчёте должны быть заданы. Приблизительно нейтральная среда оставляет внутренние фосфатные фрагменты отрицательно заряженными; конкретное состояние концов зависит от их состава и pH. Химический смысл остова подтверждают Alberts, Chemical Components of a Cell и определения IUPAC.
Не следует представлять клеточное наращивание цепи как простое выделение воды из смеси неактивированных мононуклеотидов: нужны активированные участники и ферменты. Уравнение состава или число мостиков не доказывает механизм биосинтеза.
Разбор 3. Остатки, мостики и концы
В заданной линейной цепи восемь нуклеозидных остатков, между всеми соседями — обычные фосфодиэфирные мостики. У 5′-конца дополнительно есть один монофосфат, у 3′-конца — OH; других фосфатов и замыканий нет.
N(внутренних мостиков) = 8 − 1 = 7; N(P) = 7 + 1 = 8.
Семь мостиков имеют 14 эфирных плеч P–O–C, терминальный моноэфир — ещё одно: всего 15. При этом N-гликозидных связей основания с сахаром восемь. Разные числа не противоречат друг другу: считаются разные структурные объекты. Если бы 5′-конец был OH без фосфата, мостиков по-прежнему было бы семь, но P — семь и эфирных плеч — четырнадцать.
ДНК, РНК и два уровня связей
Нуклеиновая кислота — полимер с нуклеотидными звеньями. Порядок оснований в цепи составляет последовательность. ДНК и РНК различаются сахарным фрагментом и стандартным набором оснований; они не являются белками или цепями аминокислот.
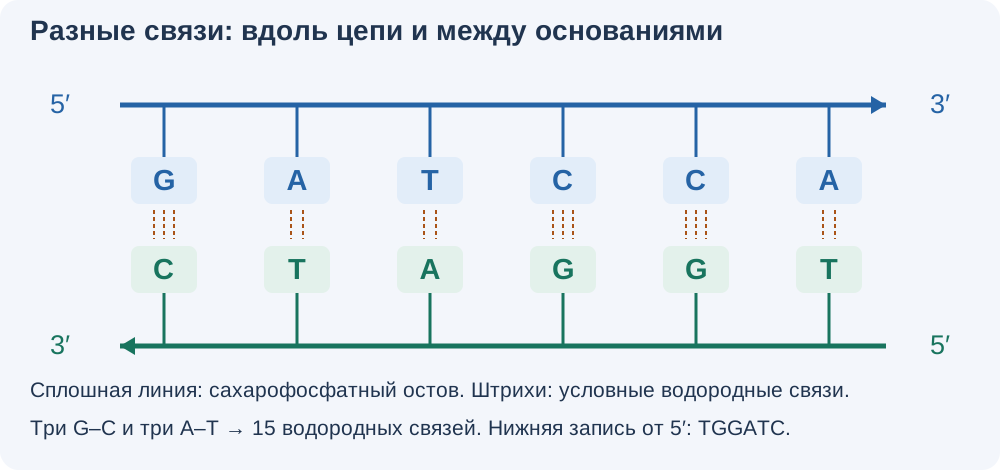
В стандартной модели клеточной ДНК две цепи противоположно направлены и комплементарны: напротив A находится T, напротив G — C. Такие канонические пары имеют соответственно две и три водородные связи. Пуриновое основание образует пару с пиримидиновым. Упорядоченность доноров и акцепторов водородных связей существенна; правило не следует из одной только суммы атомов N.
Ковалентный фосфодиэфирный остов идёт вдоль каждой цепи. Водородные связи между основаниями связывают партнёров из разных цепей. При обычной денатурации двойная спираль может распасться на цепи без разрыва всего ковалентного остова. Гидролитическое расщепление цепи — другое изменение.
Устойчивость спирали включает также взаимодействия соседних уложенных оснований — стэкинг, влияние воды, ионов, длины и последовательности. Поэтому число водородных связей — полезный счёт в заданной модели, но не готовая формула температуры плавления. Эта граница соответствует разбору упаковки оснований в Genomes.
РНК содержит рибозу с 2′-OH и в стандартном наборе — A, G, C, U. Часто это одна цепь, способная складываться и образовывать спаренные участки; существуют и двухцепочечные формы. РНК выполняет несколько типов задач, включая участие в передаче информации, структуре и работе аппарата синтеза белка. Формула «РНК всегда одна прямая нить» неверна. Наличие модифицированных оснований также не укладывается в абсолютное «тимина в РНК никогда не бывает». Базовые определения даны в NHGRI: nucleotide и RNA.
Разбор 4. Комплемент нужно ещё правильно повернуть
Для одной цепи 5′-GATCCA-3′ сначала запишем пары в том же порядке слева направо:
5′-GATCCA-3′
3′-CTAGGT-5′.
Нижняя цепь в привычном направлении 5′→3′ записывается как 5′-TGGATC-3′. Просто заменить буквы без указания концов недостаточно. В данном фрагменте три пары G–C и три A–T, поэтому в канонической модели 3·3 + 3·2 = 15 межцепочечных водородных связей и 12 нуклеотидных звеньев. Число фосфодиэфирных мостиков двух линейных цепей — 2·(6 − 1) = 10; концевые группы не превращают их в дополнительные внутренние мостики. Правило направлений сверено с OpenStax 28.2.
Двенадцать вопросов с проверкой рассуждения
- Фенол, анилин, фуран: в каких случаях гетероатом находится внутри кольца? Почему наличие N или O в брутто-формуле не решает вопрос?
- Посчитайте разные атомы кольцевого скелета пурина по двум сросшимся циклам: 6 и 5 атомов, общая связь. Почему не 11? Укажите C и N по формуле C5H4N4.
- Пиридин присоединил протон к N. Назовите формулу и заряд катиона. Почему участие неподелённой пары не требует убрать один из шести π-электронов исходного кольца?
- У фурана две двойные связи и две пары O. Верно ли «4 + 4 = 8 π-электронов»? Какие условия дополнительно проверяют перед применением правила 4n + 2?
- Расположите аденин, аденозин, AMP и ATP по классам: основание, нуклеозид, нуклеотид. Как отличить фосфатный моноэфир от связи P–O–P?
- В формальной задаче 6,94 г нейтральной свободной кислоты AMP C10H14N5O7P полностью гидролизованы только до аденозина и H3PO4. Используйте M(AMP)=347, M(аденозина)=267, M(H3PO4)=98 г/моль. Найдите количества и массы продуктов, расход воды. Почему такая брутто-формула не задаёт ионный состав раствора при любом pH?
- Для чего нужны штрихи в C1′, C2′, C3′, C5′? Назовите роль каждого положения в разобранном обычном нуклеотиде. Где отличается ДНК от РНК?
- Линейный фрагмент имеет девять нуклеозидных остатков, только 3′,5′-мостики, свободные 5′-OH и 3′-OH. Сколько мостиков, атомов P, эфирных плеч P–O–C и N-гликозидных связей? Какая часть ответа изменится после добавления только одного терминального 5′-монофосфата?
- Для 5′-AGTCG-3′ запишите комплементарную цепь сначала напротив исходной, затем отдельно от 5′ к 3′. Посчитайте пары A–T/G–C и водородные связи в канонической модели.
- В полностью спаренном двуцепочечном фрагменте ДНК всего 600 нуклеотидных звеньев; A составляет 30% от их общего числа. Найдите количества A, T, G, C, число пар и межцепочечных водородных связей. Можно ли по этому восстановить последовательность?
- Наблюдение «две цепи разошлись» доказывает гидролиз фосфодиэфирных связей? Почему обнаружение U само по себе не является полным доказательством сахарного состава исследуемого образца?
- Фрагменты 5′-AACGGT-3′ и 5′-AGACGT-3′ имеют одинаковые количества каждой буквы. Их отдельные полностью комплементарные двойные фрагменты получили одинаковый счёт водородных связей. Одинаковы ли последовательности и обязательно ли совпадают температуры плавления?
Ответы с объяснениями
- Только у фурана O — вершина кольца. У фенола и анилина O/N находятся в заместителях углеродного цикла. Брутто-формула не показывает, какой именно путь связей замкнут; требуется структура.
- Два общих атома нельзя посчитать дважды: 6 + 5 − 2 = 9. Это 5C и 4N; четыре H не являются вершинами циклов. Сросшаяся система отличается от двух отдельных несвязанных колец.
- C5H6N+, катион пиридиния. Пара N исходно лежит вне π-системы и образует новую σ-связь N–H; шесть π-электронов кольца сохраняются в этой модели. Перенос протона не следует путать с переносом электрона.
- Нет. Две C=C дают четыре электрона, одна подходящая пара O — два; всего шесть. Другая пара не входит в тот же π-контур. Необходимы замкнутая сопряжённая система и подходящая плоская геометрия; насыщенный гетероцикл нельзя сделать ароматическим одним сложением неподелённых пар.
- Аденин — основание, аденозин — нуклеозид, AMP и ATP — нуклеотиды. У AMP фосфат соединён через O с сахарным C. В ATP дополнительно есть связи P–O–P между фосфатными фрагментами; их нельзя назвать двумя обычными эфирными плечами P–O–C.
- n(AMP)=6,94/347=0,0200 моль. Суммарная модель AMP + H2O → аденозин + H3PO4 даёт по 0,0200 моль продуктов: 5,34 и 1,96 г. Воды израсходовано 0,0200 моль, или 0,360 г: 6,94 + 0,36 = 5,34 + 1,96 = 7,30 г. Формула свободной кислоты — заданная расчётная форма; диссоциация и распределение протонов в растворе зависят от pH. Соль с противоионами имела бы другой состав и молярную массу.
- Штрихи отделяют номера сахара от номеров основания. C1′ соединён с N основания; при C2′ OH в РНК и H в ДНК; O при C3′ участвует в обычном межзвенном мостике; вне пятичленного сахарного кольца находится C5′, чей O5′ связан с фосфатом в обычном 5′-нуклеотиде. Все пять C сохраняются в обоих сахарах.
- Мостиков 9 − 1 = 8; P тоже 8 при заданных концах. У мостиков 16 эфирных плеч; N-гликозидных связей 9. Дополнительный терминальный монофосфат увеличит P до 9, эфирные плечи до 17; внутренние мостики и число связей сахара с основанием останутся прежними. Концевой моноэфир не соединяет два соседних звена.
- Напротив исходной: 3′-TCAGC-5′; отдельно: 5′-CGACT-3′. Две пары A–T и три G–C дают 2·2 + 3·3 = 13 водородных связей. Переворот направления меняет порядок записи, но не пары.
- A=0,30·600=180; T=180. Оставшиеся 240 делятся поровну: G=C=120. Всего 300 пар: 180 A–T и 120 G–C. В принятом счёте 2·180 + 3·120 = 720 водородных связей. Многие разные последовательности имеют тот же состав, поэтому порядок не восстановлен. Равенства относятся ко всему полностью спаренному фрагменту, а не обязательно к одной отдельно взятой цепи.
- Нет: разобщение цепей совместимо с денатурацией без расщепления ковалентного остова. Для гидролиза нужны данные о химическом изменении и длинах/продуктах цепей. U указывает на основание, но отдельное основание или модифицированный образец не устанавливает наличие рибозы, тип всех связей и принадлежность всей молекулы к обычной РНК. Нужно исследовать сахарный компонент и структуру.
- Последовательности различны, хотя состав одинаков: A2, C1, G2, T1. У каждой двойной модели три пары A–T и три G–C, то есть 15 водородных связей. Это не доказывает одинаковую температуру плавления: порядок соседних оснований влияет на стэкинг, существенны также среда, концентрация и концы. Для численного сравнения нужны модель и дополнительные данные.
С чем связать эту тему
Кольцевой скелет продолжает тему структурных формул; различие пары N — амины. Сахарный компонент связан с углеводами, а фосфат — с фосфорной кислотой и фосфатами. Нуклеиновые кислоты и белки имеют разные мономеры и ковалентные связи. Проверять достаточность структурных данных помогает анализ таблиц и выводов.
Все новые схемы, расчётные условия и последовательности составлены для курса. Здесь разбирается химическое устройство обычных фрагментов, а не весь молекулярно-биологический курс; механизмы репликации, экспрессия генов и экспериментальное определение последовательности требуют отдельного изучения.